

Articles
Résumé
Cet article fait le point sur les changements génétiques temporels observés depuis la fin du XVIIe siècle dans les peuplements de chêne sessile. Il met en évidence une évolution génétique au niveau génomique et phénomique, et révèle des variations de caractères très intégrateurs liés à la valeur adaptative (croissance, phénologie, surface foliaire spécifique). Au-delà de l’estimation des variations génétiques temporelles, cette contribution s’attache aussi à en rechercher les mécanismes, qui stimulent et favorisent leurs accumulations, dans le but d’en tirer des conclusions sylvicoles visant à faciliter l’adaptation au changement climatique actuel.
Messages clés
- Les résultats issus du suivi génétique temporel du chêne sessile mettent en évidence une évolution génétique rapide et fluctuante en réponse aux changements climatiques.
- Ils suggèrent que cette évolution adaptative peut être facilitée par des opérations sylvicoles lors de la régénération naturelle des chênaies.
Abstract
This article explores the genetic changes across generations observed in sessile oak since the end of the 17th century. It reveals genetic evolution at the genomic and phenomic levels, as well as highly integrated traits linked to fitness (growth, phenology, specific leaf area). Going beyond the estimation of temporal genetic variations, this paper also seeks to identify the mechanisms that stimulate and facilitate their accumulation in order to draw conclusions that will help the forestry sector adapt to today’s changing climate.
Highlights
- The results of genetic monitoring across generations of sessile oak highlight rapid and fluctuating genetic evolution in response to climate change.
- They indicate that this adaptive evolution could be facilitated by forestry operations during the natural regeneration of oak forests.
Introduction
Le changement climatique actuel se caractérise par deux évolutions dont les répercussions sur les forêts et les arbres sont de nature différente : l’augmentation tendancielle et continue de la température et des gaz à effet de serre, et l’occurrence plus fréquente d’événements climatiques extrêmes (sécheresse, canicule...) (Debaeke et al., 2025). L’augmentation de la croissance et de la productivité, surtout mise en évidence lors du dernier siècle (Vacek, Vasek & Cukor, 2023), tout comme la précocité du débourrement (Menzel et al., 2006), détectée plus récemment, sont les réponses les plus perceptibles des arbres aux variations tendancielles de la teneur du CO2 et de la température. En revanche, la répétition des événements extrêmes conduit à des conséquences de nature phénotypique totalement différente, généralement des mortalités ou des dépérissements chroniques et diffus (George et al., 2022 ; Senf et al., 2020).
Ces réponses contrastées au changement climatique interrogent sur les conséquences des pressions de sélection engendrées par ces évolutions. Les arbres favorisés par la sélection naturelle générée par l’évolution tendancielle des facteurs climatiques sont-ils de même composition phénotypique et génétique, que ceux qui résistent aux effets létaux des événements extrêmes ? Il est difficile, voire impossible, de séparer in natura les effets sélectifs des deux facteurs, compte tenu de leurs contributions cumulatives à la sélection et des différences de temporalité entre les deux facteurs d’évolution climatique. On peut tout au plus reconnaître que la sélection agit sans doute de manière différenciée en réponse à ces deux pressions sélectives, sur les deux composantes de la valeur adaptative d’un arbre, qui sont la viabilité (survie) et la fécondité. On peut faire l’hypothèse que les arbres les plus féconds et vigoureux seront favorisés par l’accroissement tendanciel des facteurs du climat, alors que les arbres les plus viables échapperont aux événements extrêmes. Mais quel sera le phénotype « résultant » de ces deux pressions sélectives ? Y a-t-il une direction de l’évolution contemporaine des arbres ?
La présente contribution se propose de répondre à ces questions, en se fondant sur l’analyse des changements génétiques temporels récents, qui ont eu cours lors de périodes marquées par des changements climatiques caractérisés par l’évolution tendancielle et l’occurrence d’événements extrêmes. Au-delà de l’estimation des variations génétiques temporelles, cette contribution s’attache aussi à en rechercher les mécanismes, génétiques ou écologiques, qui stimulent et favorisent leurs accumulations, car elles sont à la source de l’évolution adaptative, darwinienne, des peuplements. Enfin, tirant parti de ces acquis sur l’évolution contemporaine, notre analyse essaie d’en tirer des conclusions sur les méthodes de renouvellement des peuplements, qui pourraient contribuer à accélérer et augmenter leur adaptation au changement climatique actuel.
Changements génétiques temporels
Les changements génétiques se produisent à l’occasion de la redistribution de l’information génétique au sein d’un peuplement forestier, qui intervient principalement lors de son renouvellement par régénération naturelle ou plantation. Les modifications de densité et de structures démographiques, consécutives à la sélection naturelle et/ou anthropique (éclaircies) contribuent également à ces changements. Le suivi des changements génétiques temporels souffre de nombreuses contraintes expérimentales et biologiques principalement liées aux délais imposés par la longévité des arbres forestiers. Idéalement, pour appréhender de tels changements, il faudrait réaliser un suivi des arbres sur plusieurs générations, tout en assurant une traçabilité génétique (généalogie) au cours des générations successives. Ces contraintes expliquent la quasi-absence de suivi temporel de nature génétique chez les arbres. On sait que de tels changements génétiques ont eu lieu dans le passé, et qu’ils furent importants, comme en témoignent les tests de provenances mis en place pour de nombreuses espèces (Leites & Benito Garzon, 2023). Par contre, le tempo et le rythme de ces modifications restent très largement méconnus. Se sont-elles produites rapidement en quelques générations, ou alors de manière progressive depuis que les peuplements sont en place ? Et on connaît encore moins l’évolution actuelle de ces changements, en réponse aux pressions imposées par l’évolution contemporaine du climat (Kremer, 2024). Malgré ces contraintes, nous avons exploré, dans le cas du chêne sessile, deux approches qui ont permis d’appréhender ces changements sur des échelles de temps pertinentes en regard de la temporalité du changement climatique actuel, et pertinentes par rapport aux pressions de sélection engendrées par le changement climatique (variations tendancielles, et événements extrêmes).
Le suivi génétique rétrospectif
La méthode consiste à comparer des populations d’arbres nées à différentes époques au sein d’une même forêt (Caignard et al., 2024 ; Saleh et al., 2022) et issues d’une même population source récente (figure 1).
Cette figure illustre le protocole expérimental utilisé pour mesurer les changements génétiques temporels dans le dispositif « suivi rétrospectif ». L’échantillonnage a porté sur des forêts de composition aussi pure que possible en chêne sessile, gérées en futaie régulière. Cette procédure a permis de minimiser les risques d’hybridation avec le chêne pédonculé, qui auraient pu masquer le signal génétique temporel, et elle a facilité la sélection de populations dont les arbres avaient approximativement le même âge, en l’occurrence des cohortes correspondant spatialement à des parcelles. Quatre cohortes, dont l’âge recouvrait la transition entre le Petit âge glaciaire et le début de l’Anthropocène, ont été sélectionnées dans chacune des trois forêts sélectionnées. Dans chaque cohorte de chaque forêt, l’ADN a été extrait de 50 arbres, et séquencé en pool (génome entier) pour l’analyse des variations génétiques au niveau du génome. Par ailleurs, sur les trois cohortes les plus anciennes, des glands ont été récoltés sur 30 arbres/cohorte puis semés, leurs semis ont été élevés en pépinière en jardin commun, et enfin ultérieurement plantés en forêt. De nombreux caractères phénotypiques ont été mesurés sur les descendants, pour le suivi des variations génétiques temporelles au niveau du phénome* (cf. infra). * Le phénome désigne l’ensemble des caractères phénotypique d’un organisme.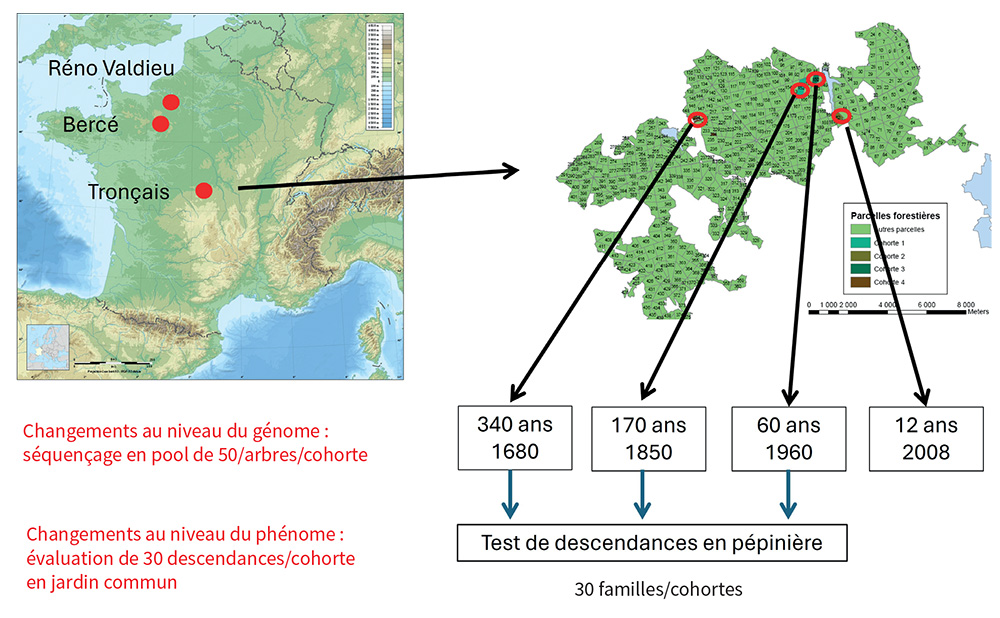
Figure 1 : Suivi rétrospectif des changements génétiques temporels chez le chêne sessile.
L’aménagement en futaie régulière facilite cette approche rétrospective ; c’est le cas notamment des grandes chênaies dont les parcelles peuvent être structurées en classes d’âge (cohortes) depuis le XVIIe siècle (date de l’ordonnance de Colbert) jusqu’à l’époque actuelle. Même si la traçabilité générationnelle n’est pas maintenue entre cohortes, nous faisons l’hypothèse qu’elles dérivent toutes d’une même population source et que leurs différences de nature génétique sont principalement attribuables à leur origine temporelle différente. Ce raisonnement a été à la base de l’échantillonnage de quatre cohortes nées autour de 1680, 1850, 1960 et 2008 dans trois forêts domaniales (Tronçais, Bercé, Réno-Valdieu), qui ont permis d’effectuer ce suivi rétrospectif. Dans chaque cohorte, une cinquantaine d’arbres ont été échantillonnés, sur lesquels l’ADN (génome entier) a été extrait et séquencé en pool
La période couverte par cette approche rétrospective (1680 à nos jours) correspond à une transition climatique entre une période froide coïncidant avec la fin du Petit âge glaciaire (1680-1850) et une période chaude marquée par le début du réchauffement de l’Anthropocène (1850-époque actuelle). La transition climatique Petit âge glaciaire-Anthropocène est bien documentée par les données instrumentales et historiques (Luterbacher et al., 2004 ; Pfister & Wanner, 2021) et se caractérise à la fois par des variations tendancielles de température et des événements extrêmes (hivers et sécheresses) (Cook et al., 2015 ; Rousseau, 2012). Si les conséquences des variations climatiques au cours de cette période ont été bien décrites dans le domaine agricole (Le Roy Ladurie, 2004 ; 2006), les effets rapportés sur les variations démographiques (mortalités) dans les forêts sont plus parcellaires (Schnitzler, 2020), ou souvent cantonnés dans des documents à diffusion plus limitée (Avila & Avila, 1987) comme les registres paroissiaux (par exemple, mortalités d’arbres consécutives aux hivers extrêmes, comme en 1709).
Le suivi génétique longitudinal
Il s’agit dans ce cas du suivi générationnel incluant la traçabilité généalogique. C’est ce qui a été réalisé au cours de deux générations successives dans une parcelle de la forêt domaniale de la Petite Charnie (Alexandre et al., 2020 ; Truffaut et al., 2017). Cette parcelle, âgée d’une centaine d’années en 1990 (génération G1), a fait l’objet d’une coupe d’ensemencement en 1989, suivie de coupes secondaires et d’une coupe définitive en 2001. Un inventaire génétique a été réalisé dans les deux générations ; les apparentements entre les arbres de la génération G1, entre ceux de la génération G2, et entre arbres parents (G1) et descendants (G2), ont tous été reconstruits à l’aide d’empreintes génétiques et génomiques (Lesur et al., 2018). L’accès à toutes les relations de parenté entre les deux générations permet d’estimer la composante génétique de caractères phénotypiques aux deux générations, autorisant de la sorte l’accès aux changements génétiques temporels. Les résultats du suivi longitudinal avaient déjà fait l’objet d’un bilan partiel dans la Revue forestière française (Kremer et al., 2020) ; dans la présente contribution, ils sont comparés à ceux du suivi rétrospectif, dans une revue plus globale des changements génétiques temporels.
Le suivi longitudinal, correspondant ici au suivi sur deux générations successives, couvre une période plus courte (1990 à 2014). Cette période est caractérisée par l’accélération du réchauffement climatique d’origine anthropique, marquée par des sécheresses prononcées en 1989, 1990, 1996 et 2005 (Truffaut et al., 2017).
Caractérisation des changements génétiques temporels
Sous le vocable de « changements génétiques », il faut comprendre deux niveaux d’estimation :
- Les changements au niveau du génome, de la séquence d’ADN, détectés par la présence de variants de séquence, et mesurés par leurs variations de fréquence entre cohortes structurées en âge.
- Les changements au niveau du phénome, c’est-à-dire de la composante d’origine génétique d’un caractère phénotypique. Pour rappel, la génétique quantitative permet de séparer la valeur phénotypique de chaque caractère observé en une composante d’origine génétique et une composante d’origine environnementale. C’est la première qui nous intéresse ici. Traditionnellement, pour l’estimer, il fallait mettre en œuvre une très lourde machinerie expérimentale basée sur la création par croisements contrôlés de famille d’arbres de généalogie connue. Dans notre cas, les croisements « naturels », qui se font lors de la pollinisation en peuplement, ont été reconstitués à partir d’empreintes génétiques et ont permis d’estimer la composante génétique d’un caractère phénotypique directement en forêt. Dans les deux suivis, de très nombreux caractères phénotypiques, relatifs à différents traits fonctionnels (croissance, phénologie, morphologie foliaire, physiologie), ont fait l’objet d’observations (tableau 1).
Ce tableau résume les variations génétiques temporelles observées dans le suivi rétrospectif (colonnes 2 et 3) et le suivi longitudinal (colonne 4). Ces résultats sont comparés avec ceux issus de tests de provenances (colonne 5), qui cumulent des variations temporelles sur des temps beaucoup plus longs, depuis que les peuplements sont en place (Holocène). Les variations temporelles notées dans le cadre du suivi rétrospectif ont été mesurées sur les descendants des cohortes âgés de 2 à 7 ans et élevés en jardin commun (Caignard et al., 2024), celles relatives au suivi longitudinal ont fait l’objet d’observations sur des copies greffées d’arbres adultes (Alexandre et al., 2020). Enfin, les mesures réalisées dans les tests de provenances ont porté sur des arbres de 20 et 30 ans (Torres-Ruiz et al., 2019 ; Girard et al., 2022). Les signes – et + dans les colonnes 2 à 4 indiquent une variation temporelle négative ou positive durant la période considérée. Pour la colonne 5, le signe – ou + indique une corrélation significative négative ou positive entre moyenne de provenance et température du lieu d’origine de la provenance, suggérant qu’il y a eu différenciation génétique entre provenances avec l’évolution de la température au cours de l’Holocène. La valeur 0 indique qu’il n’y a pas eu de variation, ni de corrélation significative (pour les résultats issus de tests de provenances). * : Torres-Ruiz et al., 2019 ; Girard et al., 2022 NM : caractère non mesuré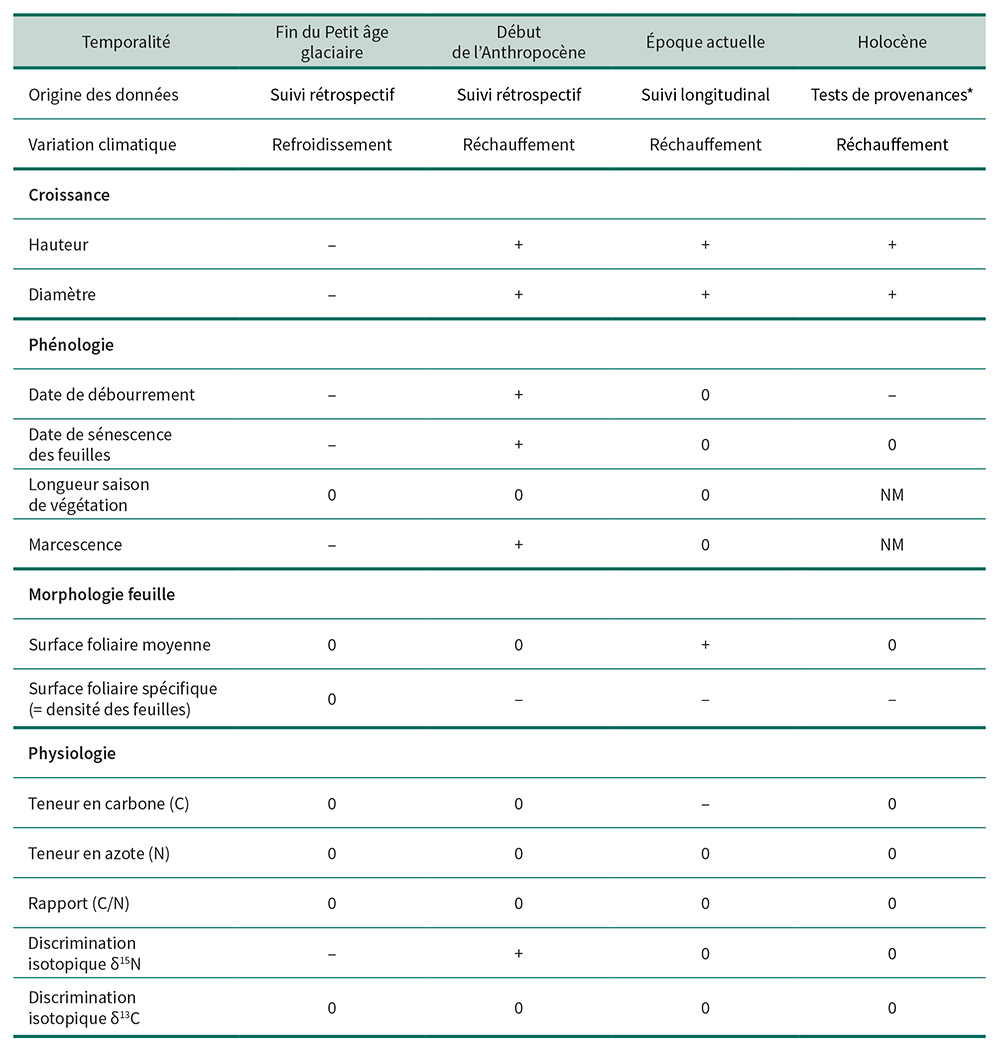
Tableau 1 : Variations génétiques temporelles observées sur plusieurs échelles de temps chez le chêne sessile. Comparaison avec les variations observées entre provenances dans les tests de provenances.
Par ailleurs, le suivi temporel des changements génétiques se réfère à des modifications populationnelles relatives à deux propriétés génétiques du peuplement forestier :
- La moyenne, qui correspond à la fréquence allélique d’un variant génétique quand le suivi est effectué au niveau du génome, et à la moyenne de la composante génétique du caractère phénotypique quand le suivi est effectué au niveau du phénome.
- La variance, qui correspond à la diversité génétique (variance d’un variant à l’intérieur de la population) quand le suivi est fait au niveau du génome, et à la variabilité génétique (variance de la composante génétique au sein du peuplement) quand le suivi est fait au niveau du phénome. Cette dernière variance est rapportée à la variance phénotypique, métrique appelée « héritabilité » dans le jargon généticien (rapport de la variance de la composante génétique sur la variance phénotypique).
Nature et amplitude des changements génétiques temporels
Quatre résultats majeurs émergent des suivis rétrospectif et longitudinal décrits précédemment (tableau 1).
Primo, au niveau du génome, les fréquences alléliques des variants génétiques varient au cours du temps, et ces variations sont distribuées sur l’ensemble du génome. Elles sont individuellement de petite ampleur mais affectent un grand nombre de gènes. Si certaines d’entre elles peuvent être attribuées à des effets stochastiques liés à l’échantillonnage, une grande partie de ces variations sont corrélées entre périodes successives d’observation, ce qui indique une origine causale systématique, attribuable à la sélection naturelle et anthropique. Ces variations sont également corrélées d’une forêt à l’autre, pour une même période d’observation, ce qui renforce l’hypothèse d’un facteur systématique agissant dans le même sens entre périodes successives et entre forêts (Saleh et al., 2021).
Deuxio, au niveau du phénome, les caractères de croissance (hauteur et diamètre), de phénologie et de surface foliaire spécifique des feuilles manifestent des variations temporelles en relation étroite avec les variations climatiques. Dans le suivi rétrospectif, ces variations, concordantes dans les trois forêts (à l’exception du débourrement), se caractérisent par la réduction de la croissance en période froide, et l’augmentation en période chaude, un débourrement plus précoce en période froide, une marcescence plus prononcée en période chaude, une diminution de la surface foliaire spécifique des feuilles en période chaude (Caignard et al., 2024). Dans le suivi longitudinal (donc en période chaude), on observe une augmentation de la croissance, une augmentation de la surface des feuilles, une diminution de la surface spécifique des feuilles (Alexandre et al., 2020).
Tertio, concernant toujours le phénome, les changements temporels génétiques affectent principalement des caractères composites ou intégrateurs, comme la croissance, la phénologie ou la surface foliaire spécifique (densité des feuilles), résultant de la contribution de multiples autres caractères plus élémentaires. Dans les deux suivis décrits précédemment, de multiples autres caractères relatifs, selon les cas, à la structure (densité du bois), à la physiologie (discrimination isotopique de l’azote ou du carbone), avaient été observés, mais n’ont pas manifesté de variations temporelles. La seule exception est celle des métabolites secondaires du bois, dont certains ont varié en composition relative entre les deux générations du suivi longitudinal, et certains caractères de morphologie foliaire en relation avec la distinction taxonomique des deux espèces (Alexandre et al., 2020).
Enfin, quarto, contrairement aux fréquences des variants génétiques et aux composantes génétiques des caractères phénotypiques, il n’y a pas de variations temporelles notoires de la diversité et de la variabilité génétique (cf. supra la fin du paragraphe « Caractérisation des changements génétiques temporels », p. 130, pour la définition de ces termes). La diversité au sein du génome et l’héritabilité des caractères restent stables (Alexandre et al., 2020 ; Saleh et al., 2022). Au plan populationnel, on peut donc résumer les changements génétiques temporels à des variations relatives aux moyennes populationnelles (fréquence de variants génomiques et composantes génétiques de caractères phénotypiques), alors que les métriques de variance populationnelle (diversité et variabilité génétiques) restent stables.
Direction et rythme des changements génétiques temporels
Les questions subsidiaires à la détection de changements génétiques temporels concernent leur rythme et leur orientation, qui peuvent être appréhendés par la comparaison des changements, soit entre les deux suivis (rétrospectif et longitudinal), soit entre les périodes climatiques (froide et chaude) du suivi rétrospectif. Ces comparaisons concluent au caractère directionnel des changements, qui émerge de la concordance observée de l’évolution de la croissance et de la surface foliaire spécifique pendant la période chaude du suivi rétrospectif et le suivi longitudinal (tableau 1). Dans les deux cas on observe une augmentation de la croissance et une diminution de la surface foliaire spécifique (augmentation de la densité des feuilles).
En second lieu, ces changements peuvent changer d’orientation au cours du temps, suggérant une évolution fluctuante. Cette alternance ressort à la fois de l’analyse des changements temporels génomiques et phénomiques. En effet, les variations génomiques sont corrélées négativement, dans les trois forêts, quand on compare ces changements entre période froide et période chaude au cours du suivi rétrospectif (tableau 1 et figure 2). De la même manière les caractères de croissance changent de sens, dans les trois forêts, entre les deux périodes : alors que la tendance est à une réduction de la croissance en hauteur et diamètre vers la fin du Petit âge glaciaire, elle s’inverse au cours de la période de réchauffement (figure 2).
Cette figure illustre les différentes perceptions de l’évolution génétique en fonction des échelles de temps parcourues pour la mesurer. Quand il y a évolution fluctuante, comme c’est le cas pour la croissance chez le chêne sessile au cours des trois derniers siècles, l’évolution estimée sur le temps long (de 1660 à 1960, t1+t2) masque le rythme de l’évolution mesurée sur des temps plus courts (t1 et t2). L’inférence des taux d’évolution actuelle, basée sur des résultats issus de tests de provenances, qui font référence aux changements génétiques depuis que les peuplements sont en place, sous-estime dans ce cas l’évolution contemporaine, qui nous préoccupe dans le contexte du changement climatique. Il n’est pas exclu qu’un échantillonnage de cohortes à des échelles de temps plus courtes encore, n’ait pas mis en évidence une évolution plus rapide. La réorientation des changements génétiques lors de la transition Petit âge glaciaire-Anthropocène, illustrée ici par la croissance mais observée également au niveau du génome (cf. texte), est une manifestation de l’évolution rapide du chêne sessile en réponse à un changement environnemental.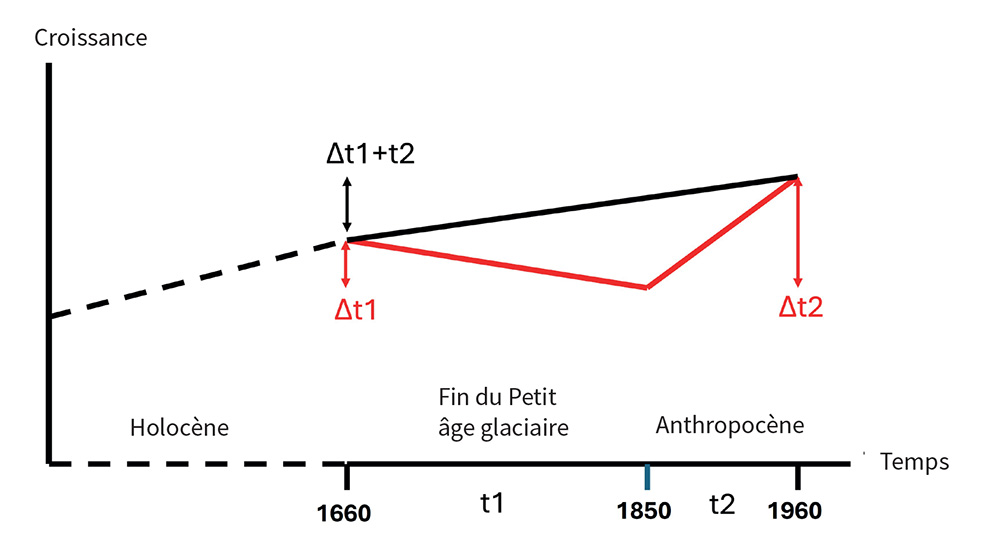
Figure 2 : Évolution fluctuante de la croissance.
En résumé, autant l’ampleur des changements génétiques temporels affectant à la fois le génome et le phénome, que leur rythme fluctuant, suggèrent que l’évolution biologique dans les chênaies se produit à des échelles de temps relativement courtes, de quelques décennies. Sans doute aurait-on pu détecter des variations plus rapides encore si des analyses avaient été effectuées à des échelles de temps plus rapprochées (figure 2).
Changements génétiques temporels et différenciation entre populations
Les résultats des suivis temporels manifestent des similitudes avec ceux obtenus dans les tests de provenances (Girard et al., 2022), qui eux expriment le cumul des changements génétiques temporels sur de longues périodes, depuis que les peuplements sont en place ; alors que les suivis temporels ne correspondent qu’à une vision plus instantanée de cette évolution (figure 2). Ces similitudes sont perceptibles autant au niveau du génome que du phénome :
- Au niveau génomique : faibles changements de fréquences des variants génétiques entre provenances (Degen et al., 2023 ; Milesi et al., 2024), et entre cohortes temporelles dans notre cas, et distribution de ces changements sur l’ensemble du génome ;
- Au niveau phénomique : différenciation génétique plus élevée pour des caractères phénotypiques, notamment les caractères plus intégrateurs (croissance, phénologie, surface foliaire spécifique) (Girard et al., 2022; Torres-Ruiz et al., 2019). La différenciation génétique entre provenances est orientée dans le même sens – en fonction de la température d’origine des provenances – que les variations génétiques temporelles durant la période chaude dans le suivi rétrospectif et longitudinal (tableau 1) ;
- Maintien du niveau de diversité et de variabilité génétique entre provenances (Milesi et al., 2024), et maintien dans notre cas de ces deux métriques entre cohortes.
Même si l’évolution sur le temps long peut masquer l’évolution instantanée (figure 2), cette similitude en elle-même n’est pas une surprise, puisque la différenciation entre provenances n’est que la résultante de l’évolution temporelle des provenances, prises individuellement. Pour résumer, les provenances tout comme les cohortes manifestent peu de différences au niveau génomique, alors que les caractères phénotypiques, en particulier ceux liés à la valeur adaptative (caractères intégrateurs) manifestent des différences nettement plus prononcées. Cet apparent paradoxe s’explique par l’architecture génétique des caractères, c’est-à-dire la manière dont s’élabore l’expression d’un caractère lié à la valeur adaptative à partir des gènes qui y contribuent. Les résultats expérimentaux obtenus chez de nombreux arbres montrent que l’expression du caractère est déterminée par un très grand nombre de gènes (nature polygénique : Hall, Hallingbäck & Wu, 2016). Par ailleurs, la covariation des effets des gènes à la contribution de la variation du caractère joue un rôle plus important que la variation des effets des gènes pris individuellement (Kremer & Le Corre, 2012 ; Le Corre & Kremer, 2012). Enfin, ce déterminisme se singularise par une certaine redondance, plusieurs combinaisons différentes de gènes pouvant aboutir au même résultat au niveau du caractère phénotypique (Laruson, Yeaman & Lotterhos, 2020). Nous verrons par la suite que cette architecture facilite la rapidité de l’action de la sélection naturelle.
Les moteurs des changements génétiques
L’orientation directionnelle des changements génétiques temporels (au niveau génomique et phénomique), leur alternance en fonction des conditions climatiques sont interprétées comme la résultante de facteurs systématiques, que l’on peut attribuer à la sélection induite par les modifications climatiques sévissant durant les périodes d’observation ou générée par l’intervention humaine. D’autres facteurs que la sélection (naturelle et/ou anthropique) pourraient être invoqués (l’âge, les variations microstationnelles, les flux directionnels de gènes…), mais leur contribution peut difficilement rendre compte du caractère convergent des variations observées entre les forêts du suivi rétrospectif et entre les deux suivis. C’est donc le tri des individus et des gènes, causé par les différences de fécondité et de viabilité, qui génère les changements génétiques. L’ampleur des changements dépend de l’importance des ressources disponibles, sur lesquelles s’exerce le tri, et des mécanismes qui actionnent ce tri (Walsh & Lynch, 2018). Lors du renouvellement du peuplement, ces ressources sont la diversité présente dans le peuplement parental et l’effectif en semis de la régénération à la génération suivante (le recrutement) (figure 3). Elles constituent le carburant alimentant les deux mécanismes stimulant le tri sélectif : la sélection, naturelle et/ou anthropique, et l’hérédité, qui garantit la transmission des changements à la génération suivante. Ces quatre ingrédients (diversité, recrutement, hérédité et sélection) concourent indissociablement aux changements génétiques consécutifs au renouvellement des peuplements forestiers, et méritent de ce fait un examen particulier de leur origine, permanence et rôle dans l’évolution génétique des peuplements forestiers (figure 3).
Les changements génétiques temporels se produisent surtout à l’occasion du renouvellement des peuplements, lors du passage d’une génération (G1) à la suivante (G2). Cette figure illustre les ressources nécessaires (diversité et recrutement), et les mécanismes à l’œuvre (hérédité et sélection) pour qu’il y ait modification de la composition génétique lors du passage de G1 à G2. Pour des raisons pédagogiques et illustratives, l’exemple de la figure est volontairement caricatural et porte sur l’évolution de la couleur du houppier, comme caractère lié à la valeur adaptative de l’arbre. Une condition nécessaire, pour qu’il y ait évolution, est que ce caractère soit variable (diversité) dans la population parentale de départ (G1), que celle-ci se reproduise si possible en nombre (recrutement), et que le caractère soit transmissible lors de la reproduction (hérédité). Dès lors, comme la couleur est liée à la survie des semis, ce tri occasionné par la sélection naturelle et/ou anthropique, durant la vie du peuplement, aboutira à la modification de la fréquence des arbres d’une certaine couleur dans la génération G2. Parmi ces quatre facteurs nécessaires à l’évolution, deux correspondent à des propriétés intrinsèques du peuplement (diversité et hérédité) et donnent difficilement prise à des actions sylvicoles (cf. infra). Par contre, la sylviculture pourra plus facilement agir sur le niveau de recrutement et l’intensité de sélection pour contribuer aux changements génétiques temporels et à l’amélioration de l’évolution adaptative du peuplement (cf. infra). Globalement, la sélection est très intense au cours de la vie d’un peuplement de chêne sessile mené en sylviculture régulière, la densité d’arbres variant de plusieurs centaines de milliers de semis à l’ha à une centaine d’arbres adultes lors de la coupe d’ensemencement à la fin de G2. Et l’intensité de sélection contribue à son efficacité. Cette sélection est très inégalement répartie au cours de la vie du peuplement, l’intensité la plus forte s’exerçant dans la phase juvénile (15-20 ans), durant laquelle plus de 95 % des jeunes arbres sont éliminés, principalement par sélection naturelle. Dans le contexte actuel du changement climatique, l’une des conclusions sylvicoles tirée de nos données, serait d’accroître autant que possible le succès reproducteur et le recrutement, et d’accroître la phase juvénile d’exposition à la sélection naturelle pour activer l’évolution adaptative (cf. infra).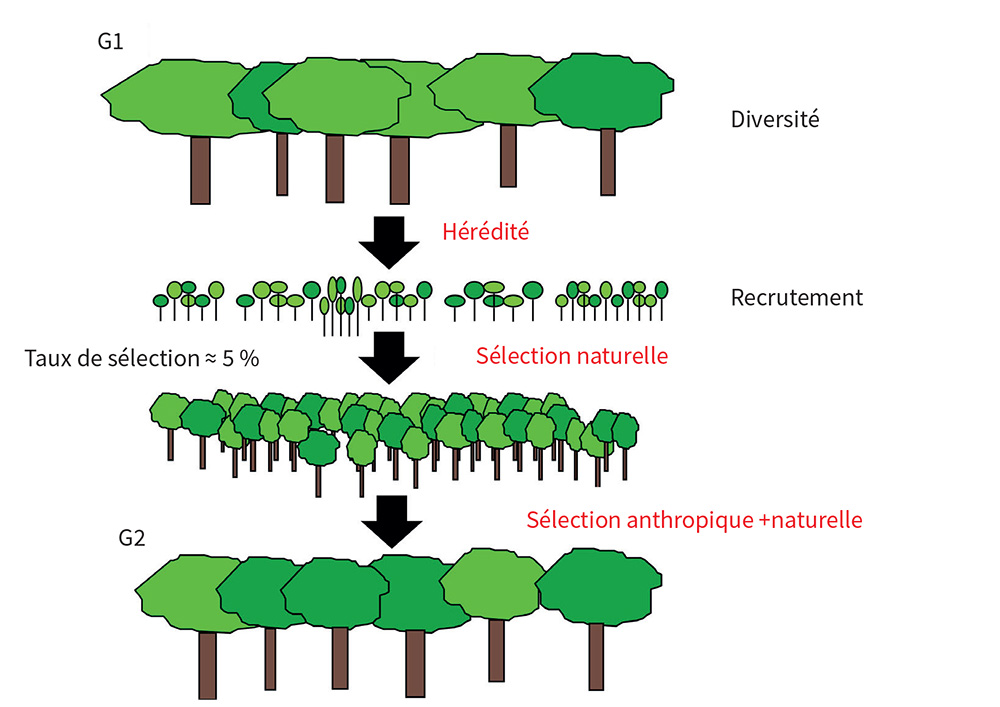
Figure 3 : Moteurs des changements génétiques temporels.
La diversité
La diversité au sens générique du terme (comprenant à la fois la diversité génomique et la variabilité) est considérable chez les chênes, qui se caractérisent par des traits d’histoire de vie favorisant les échanges génétiques (taille de populations élevée, flux de pollen importants, aire de distribution continue…). C’est une propriété du peuplement, héritée de son histoire évolutive, générée au fil de l’histoire par les mutations et maintenue et partagée entre peuplements grâce aux flux de gènes intra- et interspécifiques (Gerber et al., 2014 ; Kremer et al., 2020). Les inventaires de diversité ont montré qu’elle est remarquablement maintenue sur l’ensemble de l’aire de distribution du chêne sessile, sans différenciation géographique ou spatiale notoire (Mariette et al., 2002). Plus récemment, ces résultats ont été confortés par l’absence de différenciation temporelle à différentes échelles de temps, y compris lors de changements environnementaux de grande ampleur, comme l’alternance des cycles glaciaires-interglaciaires (Milesi et al., 2024 ; Wagner et al., 2024). C’est cette diversité (qualifiée de diversité résidente, ou standing genetic diversity par les Anglo-Saxons) qui alimente l’élaboration des changements génétiques temporels évoqués précédemment.
Le recrutement
À la génération suivante, la régénération est le réceptacle de la diversité. Son succès numérique, résultant des flux de pollen et de graines, permet de maintenir les variants génétiques présents dans la population parentale, et constitue la cible de la sélection. Autant le niveau de diversité est imposé par l’histoire, autant le recrutement dépend des conditions environnementales et démographiques ayant cours depuis la pollinisation jusqu’au développement juvénile des semis (Jarret, 2004). Les suivis de fructification chez les chênes tempérés indiquent que la production de glands n’est, pour l’instant, pas limitée par l’évolution climatique actuelle (Caignard et al., 2024), alors que la survie des semis l’est beaucoup plus, notamment du fait de la compétition (Mölder et al., 2019 ; Petritan, Toiu, Tudose & Petritan, 2025). Ces études soulignent cependant que la densité initiale de semis est un des facteurs essentiels du succès du recrutement (Kuehne et al., 2020).
L’hérédité des caractères liés à la valeur adaptative
L’hérédité des caractères est généralement appréhendée dans des familles d’arbres issues de croisements contrôlés et élevées dans des plantations expérimentales, permettant de contrôler les effets de milieu (test de descendances). Ces dispositifs ont montré que les caractères liés à la valeur adaptative des chênes sont héritables (Caignard et al., 2019 ; Scotti-Saintagne et al., 2004). La reconstitution de croisements par analyse de parenté faite à l’aide d’empreintes génétiques montre que cette héritabilité mesurée en peuplement, même si elle est plus faible, est suffisante pour contribuer aux changements génétiques à la génération suivante (Alexandre et al., 2019). Tout comme la diversité, l’hérédité reste une propriété inhérente au peuplement forestier, liée à sa structure et à sa composition génétique. Elle est donc a priori peu modulable par l’action humaine.
La sélection naturelle et anthropique
C’est le véritable moteur de l’évolution mais son efficacité dépend étroitement du niveau des ressources disponibles (diversité et recrutement). Dans notre cas d’étude (suivi rétrospectif), l’aménagement en futaie régulière a conduit à l’exposition d’une densité très élevée de semis à la sélection naturelle, générant une sélection très intense (Truffaut et al., 2017). D’un point de vue démographique, on peut distinguer deux phases sélectives en peuplement de chênes (figure 3) : une phase juvénile (une vingtaine d’années) caractérisée par une exposition à la sélection naturelle (compétition pour les ressources, résistances aux stress biotiques et abiotiques...) et une phase ultérieure dominée par l’intervention humaine lors des éclaircies (Jarret, 2004). Ces deux phases contrastent par l’intensité de sélection. Plus de 95 % des semis et jeunes plants sont éliminés lors de la phase juvénile durant l’exposition à la sélection naturelle. La phase juvénile peut être plus sélective encore si on y inclut la phase graines, au cours de laquelle une prédation très importante peut diminuer de manière drastique les taux de sélection. Ce rappel sur les évolutions démographiques au cours de la vie d’un peuplement de chênes souligne la variation temporelle de l’action de la sélection, et permet d’orienter l’action du sylviculteur pour en accroître l’efficacité.
À partir de ces quatre éléments, comment expliquer le niveau, la rapidité et l’orientation des changements génétiques que nous avons observés et décrits dans les paragraphes précédents ? Bien qu’on ne puisse séparer l’action des variations graduelles des facteurs climatiques de celle des événements extrêmes, il est probable que l’ampleur des variations génétiques temporelles que nous avons observées dans le cas du suivi rétrospectif soit liée à l’intensité de la sélection naturelle qui a eu cours lors des multiples événements extrêmes qui se sont produits durant la fin du Petit âge glaciaire (Cook et al., 2015 ; Rousseau, 2012). Des mortalités importantes ont été rapportées dans des documents historiques relatant notamment les dégâts occasionnés par des hivers extrêmes (Hausendorff, 1940 ; Schnitzler, 2020). Plus récemment, au cours du XXe siècle, des dépérissements répétés ont été observés à la suite notamment de sécheresses extrêmes (1921, fin des années 1940, 1976) (Delatour, 1983 ; Thomas, Blank & Hartmann, 2002).
La rapidité des changements génétiques est liée au niveau de diversité résidente dans les peuplements, et à l’architecture génétique des caractères. Comme nous l’avons rappelé, les caractères soumis à sélection (caractères intégrateurs) dépendent d’un très grand nombre de gènes distribués sur l’ensemble du génome (Leroy et al., 2020). Et les caractères phénotypiques résultent de l’association d’un grand nombre de gènes. La sélection agit sur l’assemblage des effets de tous les variants sur l’ensemble du génome, plus que sur les gènes eux-mêmes (Sella & Barton, 2019). C’est la combinatoire de cet assemblage (covariation) qui rend compte des variations des caractères phénotypiques. Les résultats expérimentaux et les analyses théoriques montrent que, au niveau populationnel, ces covariations peuvent contribuer à l’adaptation locale en un nombre très limité de générations (Ehrlich, Wagner, Oleksiak & Crawford, 2021 ; Kremer & Le Corre, 2012). Et comme la réserve de diversité est très importante, la sélection naturelle n’a que l’embarras du choix pour réaliser ces assemblages et répondre aux pressions de sélection. L’orientation fluctuante n’est qu’une conséquence de cette rapidité de l’évolution. Dès que les pressions de sélection changent sous l’effet du changement des conditions environnementales, comme dans le cas de l’alternance Petit âge glaciaire-Anthropocène dans notre exemple, les covariations des meilleurs variants génétiques dans les combinaisons ciblées par la sélection changent de sens, et l’évolution est réorientée (figure 2).
Évolution biologique et renouvellement des peuplements
Si l’évolution biologique est rapide chez les chênes, quels sont les leviers d’action pour en accroître l’efficacité lors du renouvellement des peuplements ? Des quatre éléments moteurs de l’évolution que nous avons évoqués précédemment, seuls deux donnent réellement prise à l’action du sylviculteur : le recrutement et la sélection. La diversité et l’hérédité sont des propriétés du peuplement, héritées de l’histoire (diversité) ou intrinsèques à sa structure génétique (hérédité) et sont donc peu modulables par l’Homme au moment des opérations de renouvellement. On peut néanmoins mentionner les valeurs élevées de diversité génétique présente dans les chênaies, et l’homogénéité géographique et temporelle de cette diversité.
Par contre, le sylviculteur peut intervenir sur le recrutement en favorisant autant que possible le succès numérique de la régénération. Augmenter la densité de semis conduit à un taux de sélection plus important et à des changements génétiques plus élevés. Concrètement, la densification peut être obtenue par l’extension de la durée de régénération en profitant de plusieurs années de fructification. Exposer les semis issus de régénérations plus longuement à la sélection naturelle en allongeant la phase juvénile, pendant laquelle il n’y a pas intervention humaine est une autre alternative.
Enfin la temporalité est un dernier levier d’action du sylviculteur : réduire les longueurs de génération tout en augmentant la période juvénile d’exposition à la sélection naturelle, devrait participer à une évolution adaptative plus rapide et efficace. Elle devrait par ailleurs permettre de réduire le fardeau évolutif engendré par la pollinisation à partir des plus vieux arbres lors de la régénération naturelle. Ces arbres ont été sélectionnés sous des pressions sélectives différentes des pressions actuelles, pouvant se traduire par une moindre adaptation aux conditions climatiques présentes. Cette maladaptation s’accroît avec la rapidité d’évolution du climat et avec l’âge de ces arbres. D’un point de vue purement évolutif, on a donc intérêt à faire « tourner » les générations plus rapidement dans la gestion courante du renouvellement des peuplements. Cette suggestion n’est pas incompatible avec le maintien de « vieilles parcelles » ou de vieux arbres – comme il est de coutume chez les chênes – qui répondent à d’autres objectifs, comme la conservation de la biodiversité ou d’un patrimoine biologique. Mais autant que possible, leur contribution à la pollinisation de parcelles en régénération devrait être limitée. Enfin, les connaissances acquises sur les changements génétiques temporels contribuent au débat sur le choix des méthodes de renouvellement des peuplements, notamment quand le forestier s’interroge sur l’utilisation du flux de gènes assisté, ou de la régénération naturelle en cas de mortalités consécutives à des dépérissements.
Régénération naturelle versus flux de gènes assisté
L’objectif du flux de gènes assisté est d’introduire par plantation dans un peuplement en renouvellement des plants venant d’un autre peuplement de la même espèce ayant connu des pressions de sélection similaires à celles ayant cours actuellement ou ultérieurement dans le peuplement en renouvellement (Aitken & Whitlock, 2013). Le choix des populations à transférer est basé sur les similarités de conditions climatiques sévissant dans le peuplement d’origine et les conditions prédites par différents modèles climatiques du GIEC dans le peuplement de destination. Cette recommandation fait l’hypothèse implicite que le transfert de populations conduira à l’introduction de gènes « préadaptés » aux nouvelles conditions climatiques, à charge pour ceux-ci de se répandre ultérieurement dans l’ensemble du peuplement et de faciliter son adaptation à l’évolution climatique en cours. Les connaissances acquises sur les changements génétiques temporels, qui ont été évoqués précédemment, incitent cependant à revisiter l’utilisation du flux de gènes assisté au regard des éléments suivants :
- La diversité génétique est du même ordre de grandeur entre les peuplements, en particulier entre le peuplement d’origine et le peuplement de destination. Les différences de fréquence des variants génétiques sont minimes, et la très grande majorité de variants sont présents partout.
- En puisant dans cette réserve de gènes riche et également distribuée, la sélection naturelle favorise les combinaisons optimales pour les conditions locales dans la régénération naturelle. La notion de gènes « préadaptés » perd sa signification quand le mode d’action de la sélection naturelle privilégie la covariation des effets des gènes dans l’architecture génétique des caractères liés à la valeur adaptative.
- Il est fort probable que les combinaisons optimales propres au peuplement de destination ne soient pas celles qui ont été sélectionnées dans le peuplement d’origine et transférées dans les opérations de flux de gènes assisté. En effet, le choix du peuplement d’origine est exclusivement basé sur des similarités climatiques entre conditions climatiques actuelles du peuplement d’origine et conditions futures du peuplement de destination. Or, le transfert s’accompagne également du changement d’autres interactions écologiques, de nature abiotiques et biotiques, non prises en compte dans les critères présidant au choix du peuplement d’origine.
- Le mode d’action de la sélection naturelle privilégiant l’assortiment de combinaisons optimales de gènes est continu et rapide. Enfin, dans le cas de flux de gènes assisté mis en œuvre par plantation, le taux de sélection naturelle dans la plantation sera toujours inférieur à celui prévalant dans la régénération naturelle, où la densité de semis est nettement plus élevée.
En résumé l’évolution biologique locale, quand elle est basée sur un niveau de diversité élevé et un recrutement important, générera des assortiments de gènes conférant rapidement une adaptation aux exigences écologiques locales.
Régénération naturelle versus plantation lors de dépérissements
La répétition d’événements extrêmes au cours des dernières années, de nature et d’origine différentes, a généré des mortalités chroniques suscitant des inquiétudes quant au maintien local des peuplements affectés par ces dépérissements (Senf et al., 2020). L’histoire nous enseigne que de telles séquences ont eu cours lors des dernières décennies de manière récurrente chez les chênes, à une fréquence d’au moins un événement extrême par génération d’arbres (Delatour, 1983 ; Thomas et al., 2002). L’histoire nous enseigne aussi que les peuplements atteints par de tels événements ont souvent « récupéré » à la suite de leur renouvellement par régénération naturelle, et les quelques exemples de suivi diachronique de la récupération chez d’autres espèces soulignent la contribution essentielle de la diversité et du recrutement lors de ces phases de récupération (Cortes-Molino et al., 2022).
La critique la plus souvent émise au recours à l’histoire récente des dépérissements pour invoquer les capacités de résilience des peuplements dans le contexte actuel, est que la rapidité et l’intensité des événements extrêmes actuels sont sans commune mesure avec celles des événements passés. Cependant, même si intensité et fréquence diffèrent, les mécanismes évolutifs à l’œuvre pouvant conduire à la résilience des peuplements, étaient, sont et seront les mêmes.
Nos résultats fournissent quelques éléments de réponse sur ces mécanismes et leurs contributions à la résilience. En premier lieu, ils mettent l’accent sur les ressources nécessaires à la résilience à la suite de dépérissements, qui sont la diversité et le recrutement. Dans le cas de mortalités importantes, le risque est effectivement que le faible nombre d’arbres survivants réduise considérablement le niveau de diversité des semenciers restants. Ce risque est cependant très largement surestimé dans le cas des chênes. En effet, la pollinisation anémophile et les flux de gènes considérables mis en évidence expérimentalement dans les peuplements peuvent restaurer en une seule génération cette diversité dans la population de semis issus des semenciers survivants. Le succès reproducteur des semenciers, et donc le recrutement est primordial. C’est lui qui déterminera le choix entre régénération naturelle ou plantation, plus que le nombre de semenciers survivants. Enfin la sélection, comme mécanisme à l’œuvre dans la résilience, tient également une place importante. Elle s’exerce sur un pas de temps relativement court, à la fois dans le peuplement adulte, lors de la phase de dépérissement, et dans la population de semis. Ces deux tris sélectifs peuvent conduire à des changements génétiques importants, améliorant la résilience du peuplement, en une seule génération. Ce sont précisément les semenciers survivants ainsi que leurs semis, sélectionnés par les pressions du milieu, qui seront les véritables acteurs de l’évolution dans la génération suivante. En résumé, nos observations et résultats, contextualisés dans les situations de dépérissements, conduisent à privilégier la régénération naturelle au renouvellement par la plantation, chaque fois que le niveau de recrutement le permet – le critère de décision, entre régénération naturelle et plantation étant principalement le niveau de recrutement plutôt que le nombre d’arbres adultes (semenciers) survivants.
Conclusion
Ces premiers résultats relatifs au suivi génétique temporel chez le chêne sessile mettent en évidence des changements évolutifs qui se produisent à des échelles de temps pertinentes au regard des préoccupations portant sur le changement climatique actuel. Au-delà de notre cas d’étude, les résultats récents obtenus chez d’autres espèces (Eberhardt et al., 2026 ; Metheringham et al., 2025) suggèrent que l’évolution génétique à une échelle de temps contemporaine a cours chez des espèces partageant des traits d’histoire de vie avec les chênes : taille de population élevée, flux de gènes importants, aire continue… (Kremer, Chen & Lascoux, 2025). Ces changements temporels affectent principalement des caractères très intégrateurs en rapport avec la valeur adaptative (croissance, phénologie, surface foliaire spécifique) et pour lesquels des différenciations entre provenances avaient été signalés antérieurement. On notera que, pour la croissance, l’évolution génétique est parallèle à l’évolution phénotypique de la productivité qui avait été observée par les études dendrochronologiques durant les premières phases du changement climatique d’origine anthropique (Kint et al., 2012 ; Stimm et al., 2022). Ces observations suggèrent que les variations tendancielles de la température et de la teneur en CO2 ont stimulé une sélection plus intense en faveur des arbres à croissance rapide. Les rares suivis de variations phénotypiques temporelles de la surface foliaire spécifique suggèrent également un parallélisme entre variation génétique et variation phénotypique (Thomas, Preusser, Backes & Werner, 2024). Par contre, pour la date de débourrement, le suivi rétrospectif a mis en évidence une évolution génétique vers un débourrement plus tardif au cours du réchauffement climatique, alors que les variations phénotypiques observées ces dernières décennies manifestent clairement une évolution phénotypique vers une précocité plus prononcée (Dantec et al., 2014 ; Vitasse et al., 2011). Cette opposition entre variation génétique et variation phénotypique peut s’expliquer par l’orientation différentielle des pressions de sélection. Les variations tendancielles du climat, favorisant des arbres à croissance en hauteur plus rapide, pourraient avantager ceux ayant une saison de végétation plus longue en rapport avec un débourrement plus précoce. Cependant l’occurrence d’événements extrêmes (ici de gels tardifs) favorisera des arbres à débourrement plus tardif. Cette opposition des effets sélectifs pourrait expliquer les variations temporelles contrastées entre valeurs génétiques et phénotypiques.
La rapidité des changements génétiques, dont témoigne la réorientation de leur direction lors de la transition entre le Petit âge glaciaire et le réchauffement de l’Anthropocène, nous amène à reconsidérer notre perception intuitive de l’évolution génétique dans les chênaies. L’acception la plus souvent admise est celle d’une évolution lente au regard de la vélocité des changements climatiques, notamment dans le cas d’espèces aussi longévives que les chênes. Les arguments invoqués à l’appui de cette assertion, comme la longueur des générations, sont mis en défaut par le mode d’action et l’efficacité de la sélection naturelle, qui peut trier en un nombre limité de générations les meilleures combinaisons de gènes permettant de répondre aux pressions du milieu. L’efficacité de ce tri est accrue par la diversité disponible et les ressources démographiques, que constituent les densités de semis lors des régénérations. L’aspect encourageant relatif à ces ressources, est que la diversité est non seulement élevée, mais maintenue géographiquement et temporellement, permettant de focaliser l’action du sylviculteur sur le succès de la régénération naturelle et le recrutement dans une gestion orientée vers la résilience des peuplements. Enfin, la distribution homogène de la diversité, conjuguée au mode d’action de la sélection naturelle favorisant les combinaisons génétiques disponibles dans cette diversité, confère à chaque peuplement des capacités de résilience à partir de ses propres ressources (résilience locale), sans faire appel à des ressources extérieures. La notion de « résilience locale » fait écho à celle d’« adaptation locale » qui, elle, traduit la variation spatiale des capacités d’adaptation. L’« adaptation locale » avait été très largement mise en évidence dans les tests de provenances, et avait conduit à l’aphorisme anglo-saxon « local is the best » quand il s’agissait de choisir une source de graines pour la plantation. La « résilience locale », suggérée par nos résultats, projette cet aphorisme vers l’avenir en affirmant « local will be the best » quand il s’agira de prendre une décision sur le choix d’une méthode de renouvellement dans le contexte du changement climatique.
Remerciements
Les travaux de recherche relatifs aux suivis génétiques temporels ont été menés dans le cadre du projet ERC TREEPEACE (FP7-339728), soutenu par l’Union Européenne, et ont bénéficié du concours de l’Office national des forêts. Je remercie vivement Hermine Alexandre, Laura Truffaut, Dounia Saleh, Thomas Caignard, Jun Chen, Sylvain Delzon, José Manuel Torres-Ruiz pour le recueil, l’analyse et l’exploitation des données issues des suivis temporels.
Notes
- 1. Mélange équimolaire des extraits d’ADN des 50 arbres.
Références
- Aitken, S. N., & Whitlock, M. C. (2013). Assisted gene flow to facilitate local adaptation to climate change. Annual review of ecology, Evolution and Systematics, 44, 367-388.
- Alexandre, H., Truffaut, L., Ducousso, A., Louvet, J. M., Nepveu, G., Torres-Ruiz, J. M., ... Kremer, A. (2019). In situ estimation of genetic variation of functional and ecological traits in Q. petraea and Q.robur. Tree Genetics & Genomes, 16, 32.
- Alexandre, H., Truffaut, L., Klein, E., Ducousso, A., Chancerel, E., Lesur, I., ... Kremer, A. (2020). How does contemporary selection shape oak phenotypes? Evolutionary Applications, 13, 2772-2790. doi:10.1111/eva.13082
- Avila, F., & Avila, M. (1987). Le froid de Janvier 1985 et les grands hivers passés dans le Sud-Ouest de la France. Revue géographique des Pyrénées et du Sud Ouest, 58, 5-22.
- Caignard, T., Delzon, S., Bodénès, C., Dencausse, B., & Kremer, A. (2019). Heritability and genetic architecture of reproduction related traits in a temperate oak species. Tree Genetics & Genomes, 15(1). doi:10.1007/s11295-018-1309-2
- Caignard, T., Truffaut, L., Delzon, S., Dencausse, B., Lecacheux, L., Torres-Ruiz, J. M., & Kremer, A. (2024). Fluctuating selection and rapid evolution of oaks during recent climatic transitions. Plants People & Planet, 6(1), 221-237.
- Cook, E. R., Seager, R., Kushnir, Y., Briffa, K. R., Buntgen, U., Frank, D., ... Zang, C. (2015). Old World megadroughts and pluvials during the Common Era. Science Advances, 1(10). doi:10.1126/sciadv.1500561
- Cortes-Molino, A., Linares, J. C., Viñegla, B., Lechuga, V., Salvo-Tierra, A. E., Flores-Moya, A., ... Carreira, J. A. (2022). Unexpected resilience in relict Abies pinsapo Boiss forests to dieback and mortality induced by climate change. Frontiers in Plant Science, 13, 991720.
- Dantec, C. F., Vitasse, Y., Bonhomme, M., Louvet, J. M., Kremer, A., & Delzon, S. (2014). Chilling and heat requirements for leaf unfolding in European beech and sessile oak populations at the southern limit of their distribution range. International Journal of Biometeorology, 58, 1853-1864.
- Debaeke, P., Graveline, N., Lacor, B., Pellerin, S., Renaudeau, D., & Sauquet, E. (Eds.). (2025). Agriculture et changement climatique. Impacts, adaptation et atténuation. Versailles: QUAE.
- Degen, B., Blanc-Jolivet, C., Mader, M., Yanbeava, V., & Yanbaev, Y. (2023). Introgression as an important driver of geographic genetic differentiation within European white oaks. Forests, 14, 2279.
- Delatour, C. (1983). Les dépérissements de chênes en Europe. Revue Forestière Française, 35(4), 265-282. DOI : https://dx.doi.org/10.4267/2042/21659
- Eberhardt, L., Reuss, F., Mieto Blasquez, M. E., Hetzer, J., Feldmeyer, B., & Pfenninger, M. (2026). Climate chnage intensifies rapid genomic selection beyond ancestral niche of Fagus sylvatica. BioRxiv, 2026.03.09, 710448.
- Ehrlich, M. A., Wagner, D. N., Oleksiak, M. F., & Crawford, D. L. (2021). Polygenic selection within a single generation leads to subtle divergence among ecological niches. Genome Biology and Evolution, 13(2), evaa257.
- George, J. P., Bürkner, P. C., Sanders, T. G. M., Neumann, M., Cammalleri, C., Vogt, J. V., & Lang, M. (2022). Long-term forest monitoring reveals constant mortality rise in European forests. Plant Biology, 24(7), 1108-1119. doi:10.1111/plb.13469
- Gerber, S., Chadoeuf, J., Gugerli, F., Lascoux, M., Buiteveld, J., Cottrell, J., ... Kremer, A. (2014). High rates of gene flow by pollen and seed in oak populations across Europe. Plos One, 9(1), e85130. doi:10.1371/journal.pone.0085130
- Girard, Q., Ducousso, A., Boubée de Grammont, C., Louvet, J. M., Reynet, P., Musch, B., & Kremer, A. (2022). Provenance variation and seed sourcing of sessile oak (Quercus petraea (Matt.) Liebl.) in France. Annals of Forest Science, 79, 27.
- Hall, D., Hallingbäck, H. R., & Wu, H. X. (2016). Estimation of number and size of QTL effects in forest tree traits. Tree Genetics & Genomes, 12, 110.
- Hausendorff, E. (1940). Frostschäden an Eichen. Aus der Geschichte des Forstamtes Grimmitz/Uckermarck. Zeitschrift für Forst-und Jagdwesen, 72, 3-35.
- Jarret, P. (2004). Chênaie atlantique: Lavoisier.
- Kint, V., Aertsen, W., Campioili, M., Vansteenkiste, D., Delcloo, A., & Muys, B. (2012). Radial growth change of temperate tree species in response to altered regional climate and air quality in the period 1901–2008. Climate Change, 115, 343-363.
- Kremer, A. (2024). Evolution biologique des arbres et évolution climatique. Futuribles, 461, 23-40.
- Kremer, A., Chen, J., & Lascoux, M. (2025). "Chimes of resilience": what makes forest trees genetically resilient? New Phytologist, 246, 1934-1951.
- Kremer, A., & Le Corre, V. (2012). Decoupling of differentiation between traits and their underlying genes in response to divergent selection. Heredity, 108(4), 375-385. doi:10.1038/hdy.2011.81
- Kremer, A., Plomion, C., Leroy, T., Alexandre, H., Truffaut, L., Delzon, S., ... Wagner, S. (2020). Évolution passée et contemporaine des chênes. Revue Forestière Française, 73(4), 297-317. DOI : https://doi.org/10.20870/revforfr.2020.5331
- Kuehne, C., Pyttel, P., Modrow, T., Kohnle, U., & Bauhus, J. (2020). Seedling development and regeneration success after 10 years following group selection harvesting in a sessile oak (Quercus petraea [Mattuschka] Liebl.) stand. Annals of Forest Science, 77, 71.
- Laruson, A. J., Yeaman, S., & Lotterhos, K. E. (2020). The importance of genetic redundancy in evolution. Trends in Ecology & Evolution, 35(9), 809-822.
- Le Corre, V., & Kremer, A. (2012). The genetic differentiation at quantitative trait loci under local adaptation. Molecular Ecology, 21(7), 1548-1566. doi:10.1111/j.1365-294X.2012.05479.x
- Leites, L., & Benito Garzon, M. (2023). Forest tree species adaptation to climate across biomes: building on the legacy of ecological genetics to anticipate responses to climate change. Global Change Biology, 29, 4711-4730.
- Leroy, T., Louvet, J. M., Lalanne, C., Le Provost, G., Labadie, K., Aury, J. M., ... Kremer, A. (2020). Adaptive introgression as a driver of local adaptation to climate in European white oaks New Phytologist, 226, 1171-1182.
- Le Roy Ladurie, E. (2004). Histoire humaine et comparée du climat. Canicules et glaciers XIIIe-XVIIIe siècles. Paris : Fayard.
- Le Roy Ladurie, E. (2006). Histoire humaine et comparée du climat. Disettes et révolutions 1740-1860. Paris : Fayard.
- Lesur, I., Alexandre, H., Boury, C., Chancerel, E., Plomion, C., & Kremer, A. (2018). Development of target sequence capture and estimation of genomic relatedness in a mixed oak stand. Frontiers in Plant Science, 9. doi:10.3389/fpls.2018.00996
- Luterbacher, J., Dietrich, D., Xoplaki, E., Grosjean, M., & Wanner, H. (2004). European seasonal and annual temperature variability, trends, and extremes since 1500. Science, 303(5663), 1499-1503. doi:10.1126/science.1093877
- Mariette, S., Cottrell, J., Csaikl, U. M., Goikoechea, P., Konig, A., Lowe, A. J., ... Kremer, A. (2002). Comparison of levels of genetic diversity detected with AFLP and microsatellite markers within and among mixed Quercus petraea (MATT.) LIEBL. and Q. robur L. stands. Silvae Genetica, 51(2-3), 72-79.
- Menzel, A., Sparks, T. H., Estrella, N., Koch, E., Aasa, A., Ahas, R., ... Zust, A. (2006). European phenological response to climate changes matches the warming pattern. Global Change Biology, 12, 1969-1976.
- Metheringham, C. L., Plumb, W. J., Flynn, W. R. M., Stocks, J. J., Kelly, L. J., Nemesio Gorriz, M., ... Nichols, R. A. (2025). Rapid polygenic adaptation in a wild population of ash trees under a novel fungal epidemic. Science, 388(6754), 1422-1425.
- Milesi, P., Kastally, C., Dauphin, B., Cervantes, S., Bagnoli, F., Budde, K. B., ... Vendramin, G. G. (2024). Resilience of genetic diversity in forest trees over the Quaternary. Nature Communications, 15, 8538.
- Petritan, A. M., Toiu, F. L., Tudose, N. C., & Petritan, I. C. (2025). Patterns of sessile oak regeneration and its main drivers in an old growth sessile oak-European beech forest. European Journal of Forest Research, 144, 1395-1408.
- Pfister, C., & Wanner, H. (2021). Climate and society in Europe: Haupt Verlag.
- Rousseau, D. (2012). Identification des grands hivers de 1676 à 2010 à l'aide de séries thermométriques de Paris. In J. Berchtold, E. Le Roy Ladurie, J.-P. Sermain, & A. Vasak (Eds.), Canicules et froids extrêmes (pp. 345-360). Paris : Hermann.
- Saleh, D., Chen, J., Leple, J. C., Leroy, T., Truffaut, L., Dencausse, B., ... Kremer, A. (2022). Genome-wide evolutionary response of European oaks during the Anthropocene. Evolution Letters, 6(1), 4-20. doi:10.1002/evl3.269
- Schnitzler, A. (2020). Spontaneous landscape dynamics in the Pays de Bitche, Lorraine (France), during the Little Ice Age. Landscape history, 41(2), 89-104.
- Scotti-Saintagne, C., Bodénès, C., Barreneche, T., Bertocchi, E., Plomion, C., & Kremer, A. (2004). Detection of quantitative trait loci controlling bud burst and height growth in Quercus robur L. Theoretical and Applied Climatology, 109, 1648-1659.
- Sella, G., & Barton, N. (2019). Thinking about the evolution of complex traits in the era of genome-wide asssociation studies. Annual review of genomics and human genetics, 20, 461-493.
- Senf, C., Buras, A., Zang, C. S., Rammig, A., & Seidl, R. (2020). Excess forest mortality is consistently linked to drought across Europe. Nature Communications, 11(1). doi:10.1038/s41467-020-19924-1
- Stimm, K., Heym, M., Nagel, R. V., Uhl, E., & Pretzsch, H. (2022). Long-term productivity of monospecific and mixed oak (Quercus petraea Matt. Liebl. and Quercus robur L.) stands in Germany: growth dynamics and the effect of stand structure. Forests, 13(5). doi:10.3390/f13050724
- Thomas, F. M., Blank, R., & Hartmann, G. (2002). Abiotic and biotic factors and their interactions as causes of oak decline in Central Europe. Forest Pathology, 32, 277-307.
- Thomas, F. M., Preusser, S., Backes, B., & Werner, W. (2024). Leaf traits of Central-European beech (Fagus sylvatica) and oaks (Quercus petraea/robur): Effects of severe drought and long-term dynamics. Forest Ecology and Management, 559, 121823.
- Torres-Ruiz, J. M., Kremer, A., Carins-Murphy, M. R., Brodribb, T. J., Lamarque, L. J., Truffaut, L., ... Delzon, S. (2019). Genetic differentiation in functional traits among European sessile oak populations growing in a common garden. Tree physiology, 39, 1736-1749.
- Truffaut, L., Chancerel, E., Ducousso, A., Dupouey, J. L., Badeau, V., Ehrenmann, F., & Kremer, A. (2017). Fine-scale species distribution changes in a mixed oak stand over two successive generations. New Phytologist, 215(1), 126-139. doi:10.1111/nph.14561
- Vacek, Z., Vasek, S., & Cukor, J. (2023). European forests under global climate change: Review of tree growth processes, crises and management strategies. Journal of Environmental Management, 332, 117353.
- Vitasse, Y., Francois, C., Delpierre, N., Dufrene, E., Kremer, A., Chuine, I., & Delzon, S. (2011). Assessing the effects of climate change on the phenology of European temperate trees. Agricultural and Forest Meteorology, 151(7), 969-980. doi:10.1016/j.agrformet.2011.03.003
- Wagner, S., Seguin-Orlando, A., Leplé, J. C., Leroy, T., Lalanne, C., Labadie, K., ... Orlando, L. (2024). Tracking population structure and phenology through time using ancient genomes from waterlogged white oak wood. Molecular Ecology, 33(3), e16859. doi:10.1111/mec.16859
- Walsh, B., & Lynch, M. (2018). Evolution and selection of quantitative traits. Oxford University Press.
 Vues: 79
 PDF: 20
 XML: 8